Механизмы кодирования, сами коды, используемые для представления информации в коленчатом теле, а тем более в зрительной коре, изучались еще очень недостаточно. О способах кодирования здесь можно высказать лишь некоторые предположения.
Ряд интересных работ был выполнен с помощью микроэлектродного отведения от одиночных клеток зрительного тракта, коленчатого тела и зрительной коры. Результаты этих работ позволяют заключить, что в высшие отделы зрительного анализатора приходят не аналоговые сигналы о распределении освещенности на сетчатке, как это предполагалось ранее, а сложно закодированные сообщения об определенных состояниях зрительного поля.
Леттвин с соавторами (Lettvin, Maturana, McCullough a. Pitts, 1959) нашли, что высший зрительный центр лягушки — зрительная покрышка (зрительные доли) — содержит четыре рода окончаний волокон зрительного нерва, располагающихся в четырех горизонтальных слоях. Каждое окончание связано с определенным локализованным районом поверхности сетчатки, являющимся ее рецептивным полем. * Два вида рецептивных полей мало отличаются от известных ранее полей типа off- и on-off, подробно описанных в первой главе. При этом авторы подчеркивают, что поле типа on—off может рассматриваться как детектор движущегося края. Оно отвечает на передвижение любого края темного или светлого объекта в нем. Поле типа off авторы назвали детектором затемнения. Кроме того, они описали еще два новых типа полей. Есть клетки, не отвечающие на включение или выключение общего освещения сетчатки, но дающие импульсацию при введении в их рецептивное поле прямолинейного края изображения. Эти единицы получили название детекторов контраста, так как они передают информацию о наличии в небольшом районе поля зрения резкой границы движущегося или неподвижного объекта с тем или иным контрастом. Наибольший интерес, по мнению авторов, представляют клетки, служащие для обнаружения кривизны на большой площади. Они не отвечают на движущийся прямолинейный край квадрата. Но если последний входит в поле своим углом, возникает сильная импульсация, интенсивность которой тем больше, чем больше кривизна края. Эти клетки обладают еще одним примечательным свойством. Они не отвечают на внезапное появление резкого края в своем поле: край должен пройти границу поля, чтобы клетка дала ответ. Оба последних типа клеток отвечают только на форму объекта, и их ответ не зависит от освещенности.
Ранее Хьюбель (Hubel, 1959) в опытах на кошке наблюдал следующий интересный эффект. Отводя потенциалы действия от одиночных клеток коры, он показал, что есть единицы, ответ которых зависит от направления движения объекта. Импульсация возникает, например, когда объект движется слева направо, но не справа налево.
Хьюбель и Визель (Hubel, 1958, 1959, 1960; Hubel a. Wiesel, 1959) показали, что рецептивные поля клеток затылочной коры кошки обладают следующими свойствами. Они также не отвечают на диффузное освещение сетчатки. Но ограниченный по площади стимул дает выраженный ответ. Исследование поля показало, что оно, так же как рецептивное поле сетчатки, имеет возбуждающие и тормозные зоны. Однако в то время как ганглиозные клетки сетчатки и клетки коленчатого тела имеют рецептивные поля, построенные концентрически, поля клеток коры не обладают такой симметрией. Несколько примеров таких полей приведено на рис. 48. Небольшое световое пятно, попадающее в зону, дающую возбуждение, вызывает on-эффект. В тормозной зоне оно вызывает подавление спонтанной активности и off-эффект. Такая организация полей, притом различающихся между собой, позволяет объяснить опознавание определенных конфигураций изображения клетками коры. Авторы показали, что в случае поля типа а на рис. 48 горизонтальное движение вертикальной полоски вдоль поля вызывает сильный ответ. Однако горизонтальное движение горизонтальной полоски не дает никакого эффекта, так как при этом одновременно раздражаются возбуждающая и тормозная зоны. Косо ориентированная полоса дает небольшой ответ. Эти данные позволяют предположить, что существующие все время тонкие движения глаз, перемещающие изображение по сетчатке, могут обеспечить опознавание контуров, соответствующих формам рецептивных полей корковых клеток.
В отличие от рецептивных полей клеток сетчатки и коленчатого тела работа корковых единиц в широком диапазоне не зависит от освещенности, в частности от соотношения освещенности фона и объекта. ** По-видимому, с этим связано еще одно свойство корковых полей. Световой стимул, полностью перекрывающий поле ганглиозной или таламической клетки, все же вызывает ответ. Раздражение поля с on-центром дает on—off-ответ, так как периферия поля не может затормозить его полностью. Все корковые клетки не отвечают на такой стимул, *** так как тормозная и возбуждающая зоны хорошо уравновешены. Большая on-зона (12°) в поле типа б на рис. 48 полностью компенсируется маленькой off-зоной (1°).
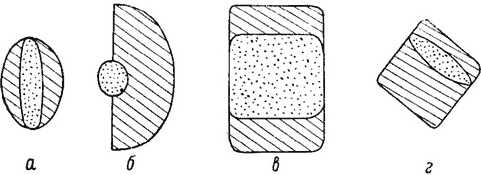
Рис. 48. Схематическое представление корковых рецептивных полей.
На основании того, что известно о рецептивных полях в настоящее время, можно считать, что существуют рецептивные поля двух типов. К первому относятся рецептивные поля на уровне сетчатки. Они выделяют сигнал из шума методом накопления и производят первичную декорреляцию изображений методом предсказания и поэлементное кодирование. Ко второму типу относятся рецептивные поля, выполняющие более сложные функции обнаружения и кодирования простейших конфигураций — элементов зрительных образов. Конечные клетки этих полей найдены в сетчатке (по крайней мере у такого низкоорганизованного животного, как лягушка), но следует в основном связывать эти поля с высшими отделами зрительного анализатора. **** Рецептивные поля второго типа кодируют наиболее часто встречающиеся простейшие конфигурации не поэлементно, а в целом, производят декорреляцию укрупнением и, следовательно, способствуют эффективному кодированию зрительных образов. *****
* Как показал Гейз (Gaze, 1958), диаметр такого поля может достигать 60°.
** Следует отметить, что и в зрительном тракте кошки обнаружены волокна, ответ которых не зависит от освещенности (Lennox, 1959).
*** Юнг (Jung, 1953) описал ответы одиночных клеток коры при общем световом раздражении сетчатки. Однако Хьюбель (Hubel, 1960) показал, что на самом деле эти ответы дают аксоны клеток коленчатого тела, оканчивающиеся в V и VI слоях зрительной коры.
**** Наличие таких полей на уровне сетчатки у лягушки и в высших этажах более высоко организованных животных следует, возможно, объяснить хорошо известным эволюционным принципом, согласно которому чем более высоко организовано животное, тем в более высокие отделы перемещается локализация функций. Вместе с тем надо иметь в виду, что экспериментальные данные, приведенные в работе Леттвина и соавторов, не исключают полностью предположения, что выходные клетки двух новых типов рецептивных полей принадлежат не сетчатке, а зрительной покрышке.
***** Общие проблемы описания образов по их признакам в связи с задачами опознания образов обсуждаются в работе Харкевича (1959).