Итак, зону полной суммации, определяемую в психофизических опытах, мы можем на основании морфологических данных сопоставить с функциональной единицей зрительной системы — рецептивным полем. Но психофизические опыты показывают, что зона полной суммации в колбочковом аппарате не является постоянной и изменяется в широких пределах с изменением освещенности. Естественно предположить, что это явление обусловлено изменениями эффективной величины рецептивного поля, т. е. той части поля, в которой происходит суммация.
Гипотезу об изменении эффективной величины рецептивного поля проверяли в ряде электрофизиологических исследований.
Каффлер (Kuffler, 1952, 1953) показал в опытах с отведением потенциалов действия от ганглиозных клеток сетчатки кошки, что если не изменять интенсивности передвигающегося по сетчатке тест-пятна, то площадь, с которой можно получить ответ, увеличивается с уменьшением интенсивности фона. Однако в более поздней работе Барлоу, Фитцхьюга и Каффлера (Barlow, Fitzhugh a. Kuffler, 1957), выполненной также на кошках, был сделан вывод, что зона полной суммации рецептивного поля при темновой и световой адаптации практически одна и та же. Вся разница в том, что при световой адаптации к этой зоне добавляется тормозное периферическое кольцо. Поэтому увеличение световой чувствительности при темновой адаптации не является следствием простого возрастания связей между рецепторами, как это предполагалось ранее (Lythgoe, 1940; Craik а. Vernon, 1941). Напротив, это результат того, что ослабляются тормозные связи.
Барлоу и соавторы определяли рецептивное поле как площадь на сетчатке, с которой можно было получить пороговый ответ. Пороговым ответом считали минимальную, еще различимую экспериментатором вспышку импульсов на фоне спонтанной импульсации из этого же поля. Но о работе зрительной системы в целом нельзя судить по одиночной клетке. В реальных условиях работы зрительной системы из-за непрерывных тонких движений глаз 3 или движений глаз, связанных со слежением за объектом, изменялась бы освещенность не только на том участке сетчатки, куда проецируется световой стимул, но и на соседних участках. Можно предположить, что порогом для данного рецептивного поля является не тот сигнал, который выделяется экспериментатором на экране осциллографа, а та разность между числами импульсов в посылках, которая может быть обнаружена мозгом при сравнении сигналов из выделяемого поля и соседних «фоновых» полей. Определять рецептивное поле по появлению пороговой импульсации можно, по-видимому, лишь при исследовании абсолютных порогов, когда раздражают только одно рецептивное поле. Применение этого метода для определения дифференциального порога не позволяет, с нашей точки зрения, установить истинные размеры рецептивного поля при освещенном фоне.
Однако нет необходимости регистрировать потенциалы действия от соседних рецептивных полей. Можно принять за критерий ответа определенное число импульсов и допустить, что оно является пороговым для какого-то уровня освещенности фона. Такой критерий был использован при обработке результатов экспериментов с отведением потенциалов действия от одиночной ганглиозной клетки сетчатки лягушки (Глезер, Иванов, Костелянец, 1960; Глезер и Костелянец, 1961). Рецептивное поле раздражали небольшим световым пятном, интенсивность которого и удаление от центра поля можно было изменять. На рис. 10 приведены результаты одного из опытов. Из графика видно, что с удалением от центра поля чувствительность уменьшается. Это выражается в уменьшении ответа при неменяющейся интенсивности светового пятна.
Этот хорошо известный ранее факт Каффлер (Kuffler, 1953) рассматривает как следствие уменьшения на периферии плотности рецепторов, сходящихся к данной ганглиозной клетке. Однако работы ряда авторов, в том числе и самого Каффлера, исследовавших взаимоотношения центра и периферии рецептивного поля, заставляют заподозрить, что здесь следует учитывать также и явления торможения.
Рассмотрим теперь рис. 11, построенный на основании данных того же опыта, что и рис. 10. Точка пересечения правой кривой с осью абсцисс на графике показывает границу рецептивного поля, определенную по пороговому критерию, как это делается обычно. В данном случае за пороговый ответ принят один импульс. С изменением критерия, т. е. с увеличением числа импульсов в ответе, принимаемого за критерий обнаружения, величина рецептивного поля закономерно уменьшается. Следовательно, если из фоновых полей приходит, например, по 3 импульса на вспышку, то при выборе в качестве порогового ответа 4 импульсов получается существенно уменьшенный размер рецептивного поля. 4
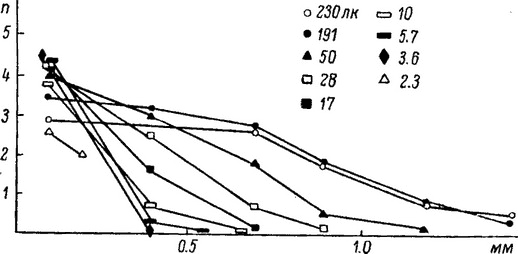
Рис. 10. Зависимость числа импульсов в ответе ганглиозной клетки сетчатки лягушки от интенсивности стимула и удаления его от центра поля.
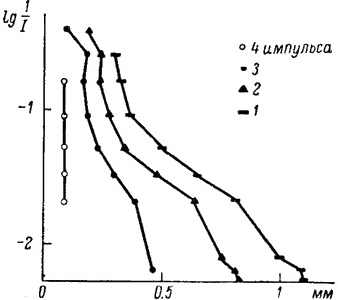
Рис. 11. Зависимость эффективной величины рецептивного поля, определенного с помощью небольшого светового пятна, от критерия ответа.
Однако этот опыт имеет существенный недостаток. Раздражались отдельные участки поля, и, следовательно, полной картины работы поля нет, так как не учитывались взаимные влияния между отдельными участками поля. Известно, что реакция целого рецептивного поля, вообще говоря, не равна простой сумме реакций отдельных его участков (Barlow, 1953b). Поэтому были проведены также опыты, в которых изменяли площадь и интенсивность пятна, но само пятно не перемещали по сетчатке. Такие опыты можно сопоставить с психофизическими опытами на человеке по определению зоны полной суммации и ее изменений.
На рис. 12 приведены результаты одного из опытов. Видно, что увеличение числа импульсов с увеличением интенсивности стимула происходит быстрее при малых площадях светового пятна. С увеличением площади стимула нарастание числа импульсов замедляется. Это замедление можно считать следствием торможения, усиливающегося с увеличением площади пятна вследствие раздражения периферических частей поля.
По данным рис. 12 построим зависимость порогового количества света IS от площади стимула S, как это мы делали обычно в психофизических опытах (рис. 13). Под пороговым количеством света здесь подразумевается энергия, необходимая для того, чтобы вызвать тот или иной уровень ответа, измеряемый числом импульсов. Как видно из рис. 13, с увеличением уровня возбуждения, принятого за критерий ответа, величина зоны полной суммации уменьшается. Уменьшается также коэффициент суммации вне зоны полной суммации. Так, при уровне ответа в 8 импульсов n=0.
Сравнивая эти кривые с кривыми, полученными в психофизических опытах на человеке (рис. 9), нельзя не обратить внимания на их удивительное сходство. Оно проявляется как в изменении зоны полной суммации, так и в изменении коэффициента суммации вне этой зоны. В одном случае фактором, вызывающим эти изменения, является уровень возбуждения исследуемой выходной клетки, в другом — уровень световой адаптации.
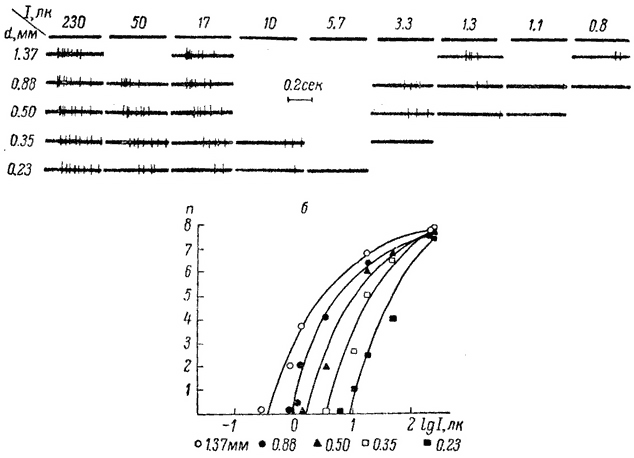
Рис. 12. Зависимость величины ответа ганглиозной клетки сетчатки лягушки от интенсивности светового пятна и его диаметра. а — отдельные реакции; б — средние данные из трех реакций.
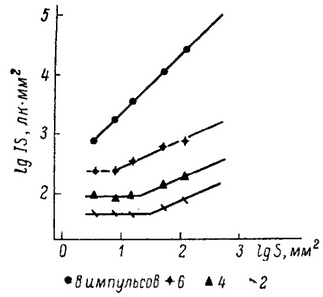
Рис. 13. Зависимость величины рецептивного поля сетчатки лягушки от критерия ответа.
Согласно развитым здесь представлениям, рецептивное поле, являющееся интегрирующей ячейкой, накапливает весь световой поток, падающий на его рецепторы.
Хорошим подтверждением этого являются, с нашей точки зрения, недавние опыты Баумгардта (Baumgardt, 1958). 5 Он определял вероятность видения вспышки постоянной и небольшой (пороговой) интенсивности либо в полной темноте (тест-объект диаметром в 1°, длительность 1 сек. на расстоянии 15° от фовеа), либо при подпороговом постоянном освещении того же места сетчатки, куда проецировался стимул, другим пятном с угловым диаметром 2—4°. Вероятность обнаружения вспышки возрастала статистически значимо при добавочном освещении. Следовательно, считает Баумгардт, гипотеза, согласно которой абсолютный порог можно считать просто предельным случаем разностного порога, неверна, так как всякое добавочное увеличение фона добавочным засветом должно было увеличить порог (в данном случае — уменьшить вероятность обнаружения). Согласно Баумгардту, если была бы верна эта гипотеза, сложение подпорогового фона с собственным светом сетчатки должно было бы дать увеличение, а не уменьшение порога.
Однако если принять, что выделение сигнала из шума связано со сравнением сигналов, приходящих из соседних рецептивных полей, то полученный результат будет вполне закономерен. Подпороговая добавочная освещенность суммируется с пороговой вспышкой, и из раздражаемого рецептивного поля идет более мощный сигнал. Наилучшие результаты могут быть получены, когда подпороговое дополнительное пятно не выходит за пределы рецептивного поля. При большой площади этого пятна шумы в соседних полях также будут увеличиваться. Это действительно наблюдалось в опыте. Баумгардт использовал небольшие по площади добавочные поля. При добавочном поле в 2° увеличение вероятности видения вспышки диаметром 1° было порядка 0.21—0.22, тогда как при добавочном поле в 4° этот прирост был в три раза меньше (0.07).
Итак, величина рецептивного поля на данном участке сетчатки определяется количеством света, который на него падает.
Прямые доказательства этого в опыте на человеке получить затруднительно.
Здесь не удается отвести какой-либо электрофизиологический ответ, выражающий определенный уровень возбуждения одного участка сетчатки. 6 Зону полной суммации независимо от фона можно было бы определить, если бы зрительная система человека была фотометром, позволяющим производить абсолютные отсчеты яркости. Но по правильному выражению Грегори (Gregory, 1955), зрительная система является фотометром сравнения, позволяющим лишь сопоставлять яркости, но не определять их абсолютную величину. Поэтому, не имея возможности прямо измерить величину возбуждения в исследуемом рецептивном поле, мы вынуждены сделать это косвенно, сравнивая уровни возбуждения выделяемого поля и фона. Но и в этом случае в конечном счете величина поля определяется уровнем его возбуждения. Яркость фона Вф играет роль уровня отсчета, позволяющего выявить сигнал с выделяемого поля.7
3 Такие движения обнаружены не только у человека, но и у некоторых животных, в частности у кошки (Hebbard a. Marg, 1960). У лягушки этих движений нет. Роль тонких движений глаз будет подробно обсуждаться в третьей главе.
4 Разумеется, этот пример является грубым упрощением. В действительности при выделении сигнала из фона следует учитывать влияние флуктуаций и ввести статистический критерий обнаружения. К обсуждению этого мы вернемся в другом разделе.
5 Эти опыты были проведены в связи с попыткой опровергнуть уже
рассматривавшуюся нами гипотезу, согласно которой абсолютный порог определяется собственными шумами сетчатки и в этом смысле тождествен
разностному порогу, определяющемуся шумами фона.
6 Электроретинографические опыты вряд ли могут помочь, так как электроретинограмма определяется в значительной степени рассеянным светом.
7 В этих рассуждениях не учитываются взаимные влияния соседних рецептивных полей. Это будет обсуждаться в третьей главе.