Теперь, располагая основными сведениями о рецептивных полях как элементах дискретной структуры сетчатки, мы можем вернуться к обсуждению зрительных порогов, также определяющих дискретную структуру зрительной системы.
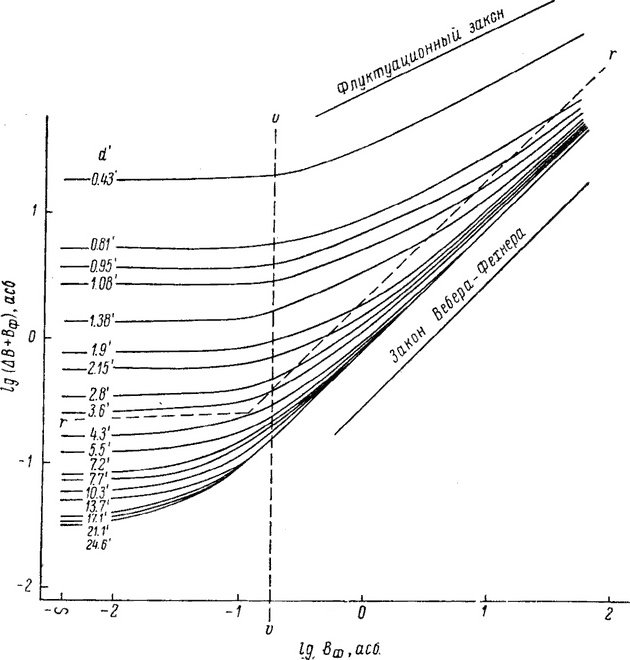
Рис. 14. Зависимость полной пороговой яркости от яркости фона при различных величинах светового стимула.
На рис. 14 приведено семейство кривых, построенных по данным тех же опытов, на основании которых были определены зоны полной суммации фовеальных колбочек на разных уровнях адаптации (рис. 9). Каждой из этих кривых соответствует определенная фиксированная площадь тест-объекта.
Линия vv разделяет области ночных и дневных освещенностей. Линия rr проведена через точки кривых, где величина стимула соответствует размеру рецептивного поля при данной яркости фона, Точки, лежащие выше этой линии, относятся к случаю, когда стимул не выходит за пределы эффективной величины рецептивного поля. Точки, лежащие ниже этой линии, относятся к случаю, когда стимул перекрывает более чем одно рецептивное поле.
В рассматриваемых опытах изучалось фовеальное (колбочковое) зрение. Поэтому при малых освещенностях и в пределах одного рецептивного поля (т. е. левее линии vv и выше линии rr на графике) порог не изменяется. Этого и следовало ожидать, поскольку при таких значениях освещенности порог определяется практически только колбочковыми темновыми шумами.* Некоторые изменения порога в зависимости от фона в области ночных освещенностей, когда световой стимул перекрывает несколько рецептивных полей (область левее vv и ниже rr), будут обсуждены в последнем разделе этой главы.
Перейдем теперь к области дневных освещенностей (справа от vv на графике), для работы в которой собственно и предназначен аппарат фовеальных колбочек. Если отвлечься от переходной области, то видно, что выше линии rr (т. е. в пределах рецептивного поля) независимо от величины поля ветви кривых имеют наклон порядка 0.5. Таким образом, при фиксированной величине светового стимула S, пока он не выходит за пределы рецептивного поля, отношение между порогом и фоном подчиняется флуктуационному закону, но не в той форме, как в равенстве (4), а в виде
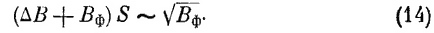
Слева стоит произведение полного порогового количества света в области действия стимула на его площадь.
Этот результат на первый взгляд представляется неожиданным и расходящимся с общепринятой точкой зрения. Однако мы уже встретились ранее с необходимостью учета полной яркости (а не разностного порога АВ) в связи с исследованием пространственной суммации в рецептивном поле.
В заключение отметим, что в области правее vv и ниже rr, т. е. в условиях дневной освещенности и при величине стимула, превосходящей рецептивное поле, наклон кривых равен 1, т. е. соблюдается зависимость

которую можно легко привести к закону Вебера—Фехнера (2).
Можно высказать некоторые предположения о причинах перехода от флуктуационного закона к закону Вебера—Фехнера (Глезер, 1960). Рассмотрим зависимость площади рецептивного полна от яркости фона Bф, показанную на рис. 15, который построен по данным тех же опытов, что и рис. 9.
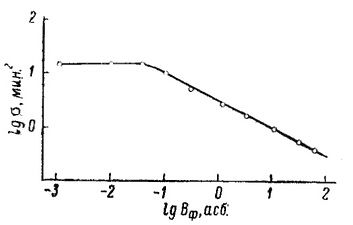
Рис. 15. Зависимость площади рецептивного поля от яркости фона.
Как видно из рис. 15, в области дневного зрения наклон кривой равен — 1/2 и здесь действует зависимость
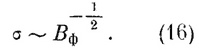
Это соотношение связывает также и размеры рецептивного поля с шумами фона, которые пропорциональны √Bф.
Учтем теперь то обстоятельство, что при увеличении яркости Bф происходит не только увеличение шума пропорционально √Bф, но еще и уменьшение рецептивного поля, а значит, уменьшение числа действующих рецепторов, входящих в одну накопительную ячейку. Это должно привести к дополнительному возрастанию влияния шумов, так как теперь суммирование происходит по меньшему числу рецепторов.
В формуле (14), выражавшей зависимость ΔB+Bф от √Bф, предполагалось, что площадь, на которую действует световой стимул, фиксирована. Условимся изменять площадь стимула S так, чтобы она все время равнялась величине действующего рецептивного поля, т. е. о при данной яркости фона. Подставляя в формулу (14) значение σ из формулы (16), получим
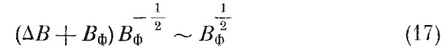
или
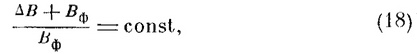
т. е. соотношение, эквивалентное закону Вебера—Фехнера.
Таким образом, дополнительное увеличение разностного порога по сравнению с тем, которое дает флуктуационный закон (соблюдающийся при фиксированных малых площадях стимулов), можно попытаться объяснить дополнительным ухудшением отношения сигнал/шум в рецептивном поле из-за уменьшения его действующей площади.
Перестройка рецептивного поля, его уменьшение с увеличением освещенности создают полезный эффект повышения остроты зрения с увеличением освещенности. Мы вернемся к обсуждению этого эффекта и его количественных закономерностей в последней главе.
Таблица 2
Пороговый контраст в зоне полной суммации
| Вф, асб | lgσ, мин.2 | lg (∆В + Вф)σ, асб мин.2 | lg (∆В + Вф) | lg[(∆В + Вф)/Вф] |
| 64.6 | 1.59 | 1.76 | 2.17 | 0.36 |
| 30.9 | 1.73 | 1.61 | 1.88 | 0.37 |
| 11.3 | 1.96 | 1.38 | 1.42 | 0.37 |
| 3.32 | 0.21 | 1.09 | 0.88 | 0.36 |
| 1.20 | 0.42 | 0.88 | 0.46 | 0.38 |
| 0.30 | 0.70 | 0.65 | 1.95 | 0.47 |
| 0.11 | 1.00 | 0.57 | 1.57 | 0.54 |
| 0.04 | 1.16 | 0.52 | 1.36 | 0.75 |
| 0.01 | 1.16 | 0.52 | 1.36 | 1.36 |
| 0.00 | 1.16 | — | — | — |
Однако за этот полезный эффект приходится платить увеличением порогов из-за сопряженного с ним ухудшения отношения сигнал/шум при уменьшении рецептивного поля.
Этот вывод подтверждается прямыми экспериментальными данными. Они приведены в таблице 2, составленной на основании тех же измерений, что и рис. 9 и 15. В первой колонке таблицы указана яркость фона, во второй — площадь рецептивного поля (в логарифмических единицах, как и в последующих колонках), соответствующего данной яркости фона, в третьей — полное пороговое количество света, падающее в пределах рецептивного поля, в четвертой — полная пороговая яркость при стимуле, соответствующем величине рецептивного поля при данной яркости фона. Как видно из последней колонки, соотношение (18) хорошо соблюдается при фотопических (дневных) яркостях и нарушается лишь при переходе к ночному зрению, где величина рецептивного поля практически уже но изменяется.
Значение константы, входящей в формулу (18), близко к 2. Следовательно, для стимулов, равных по площади эффективной величине рецептивного поля,
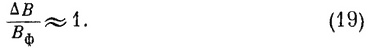
Таким образом, независимо от величины колбочкового рецептивного поля в фовеа пороговый контраст в области, где происходит изменение рецептивного поля с яркостью, постоянен и близок к 1.
Интересно, что Барлоу (Barlow, 1953b), измеряя дифференциальный порог в рецептивном поле при отведении токов действия от одиночной ганглиозной клетки сетчатки лягушки, нашел, что он равен 1.
Можно приближенно оценить число градаций, которое различается рецептивным полем человека в диапазоне, где действует соотношение (19). Нижняя граница этого диапазона равна примерно 0.3 асб, а верхняя — около 65 асб.
Так как ΔB/B=1, то разностный порог будет
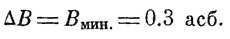
Суммарная яркость в стимуле будет соответствовать
ΔB + Bмин. = 0.6 асб.
Каждый последующий разностный порог вдвое превосходит предыдущий, m-й ступени будет соответствовать яркость 0.3 · 2m-1 асб. Приравнивая это число Bмакс, получим для оценки то равенство
0,3· 2m-1≈65,
следовательно, m≈9.
Для случаев, когда площадь стимулов превосходит рецептивное поле, значение константы в формуле (2) уменьшается (для больших площадей до величины порядка 0.02 и даже менее). Причины этого будут рассмотрены несколько далее.
Вопрос о зависимости дифференциального порога от яркости в области, где Вф больше 100 асб, т. е. там, где эффективная величина рецептивного поля соответствует одной колбочке и дальше уменьшаться не может, нельзя еще считать выясненным окончательно. Согласно уже цитированной работе Кнолля и других (Knoll, Tousey a. Hubburt, 1946), отношение между фоном и пороговым стимулом точечных размеров подчиняется флуктуационному закону. Однако, по данным Шенвалъда, это отношение соответствует закону Вебера—Фехнера.
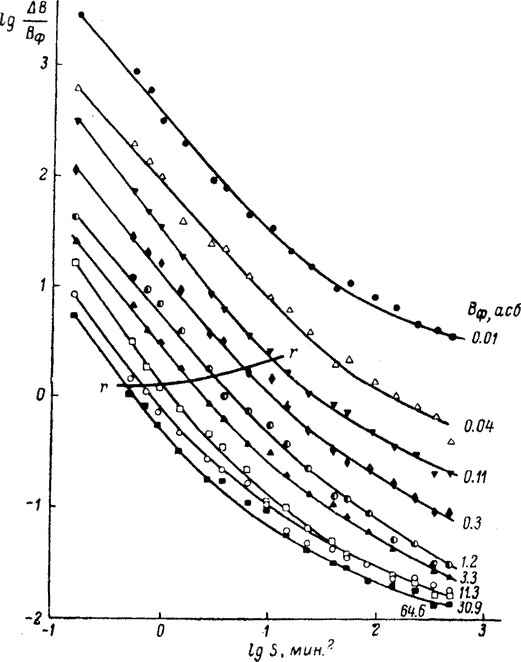
Рис. 16. Зависимость дифференциального порога от яркости фона и площади стимула в фовеальном зрении при умеренных значениях яркости фона.
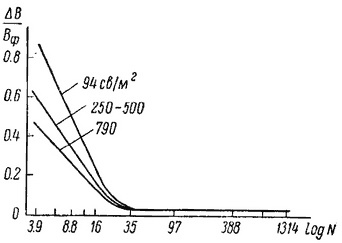
Рис. 17. Зависимость дифференциального порога от яркости фона и площади стимула в фовеальном зрении при больших значениях яркости фона (площадь определена числом колбочек, перекрытых стимулом).
Зависимость дифференциального порога от яркости фона и площади стимула для фовеальных колбочек приведена на рис. 16 и 17. Семейство кривых на рис. 17 (Dreyer, 1959) может рассматриваться как продолжение семейства кривых на рис. 16 (Глезер, 1960).
Для расчета дифференциального порога внутри палочкового рецептивного ноля нет достаточных данных. Большие значения, приписываемые некоторыми авторами ** дифференциальному порогу при очень малых яркостях фона, основаны, по-видимому, на прямом недоразумении. Действительно, как мы уже указывали раньше, определяющим при этих значениях яркости является не фон, а собственный свет сетчатки. Если учесть, что в фон надо включить собственный свет сетчатки, то получится значительное уменьшение дифференциального порога. Согласно Барлоу (Barlow, 1957а), величина собственного света сетчатки для палочек имеет порядок 4.10-5 асб. Из данных Самсоновой (1950) можно также получить эту величину. Если принять диаметр рецептивного поля за 1°, то в очень грубом приближении можно получить величину дифференциального порога для палочкового поля, близкую к единице, как и для колбочкового. Однако для надежного выяснения этого следует поставить специальные эксперименты.
* В естественных условиях при ночных освещенностях обнаружение слабо освещенных предметов производится уже не фовеальными колбочковыми, а периферическими палочковыми полями.
** См., например, работу Хендли (Hendley, 1948), где указана величина порядка нескольких десятков.