В головке спермия человека имеется хроматин, составленный из 23 хромосом (гаплоидный набор). Хромосомы состоят из линейно расположенных генов, которые при помощи ферментов участвуют в строго специфических химических реакциях.
Хромосомы клеток состоят из протеинов, рибонуклеиновой (РНК) и дезоксирибонуклеиновой (ДНК) кислот. Установлено, что именно ДНК является носителем наследственных факторов гена.
В процессе спермиогенеза происходит прогрессирующее исчезновение РНК в момент дифференциации семенной нити из сперматиды. Martin и Brachet (1959) находили в зрелых спермиях лишь следы РНК и склонны были относить это за счет загрязнения микробами и клеточным распадом. Однако дальнейшие исследования спермы сельскохозяйственных животных (Братанов и др., 1964) подтвердили присутствие РНК в головках семенных нитей, но в незначительных количествах (около 1% по отношению к ДНК), по-видимому, не имеющих столь важного практического значения как ДНК.
Молекула ДНК состоит из последовательно соединяющихся пептоз (дезоксирибоз), фосфорной кислоты, пуриновой и пиримидиновой базы. ДНК связана с протеином (гистоном) и образует дезоксирибонуклеопротеин-нуклепротеид, строительное вещество хроматина (хромосом).
Состав и количество ДНК в головках спермиев постоянны и характерны для данного вида, а порядок чередования пуриновых или пиримидиновых оснований в молекуле строго специфичен для данного индивида, являясь своеобразным шифром наследственных признаков.
Количественное содержание ДНК в эякуляте имеет большое значение, так как отражает оплодотворяющую способность спермы. В ряде исследований (Vendrely et al., 1948; Братанов и др., 1964) содержание ДНК в цельном эякуляте составляло 3%. При расчете на 109 спермиев (что более признано) названные авторы получили количество ДНК в среднем около 3 мг.
Интересны наблюдения Summerhill и Olds (1961), которые в серии опытов обнаружили колебание количества ДНК в 109 семенных нитей от 1,77 до 4,77 мг. Эякуляты со средним количеством ДНК (2,25—2,99 мг в 109 спермиев) имели лучшую «оплодотворяющую» способность, нежели содержащие меньшее или большее количество ДНК.
По мнению Meyhoffer (1963) и др., количество нуклеиновых кислот в спермиях плодовитых и бесплодных мужчин значительно разнится. На основании этих данных была высказана мысль о возможности исследования количества ДНК в качестве теста оплодотворяющей способности эякулята.
Большое число работ посвящено исследованию нуклеиновых кислот в семенных нитях сельскохозяйственных животных и меньшее — в спермиях человека. Около половины сухого веса ядра спермия быка состоит из ДНК (Vendrely et al., 1948; Mirsky et al., 1949). В то же время бесплодные быки выделяют спермии с более низким содержанием дезоксирибонуклеиновой кислоты в ядрах (Leuchtenberger et al., 1955, 1956).
Leuchtenberger и соавторы (1953, 1955) произвели определение количества ДНК в спермиях 13 мужчин, имеющих детей, и 21 мужчины обратившегося с жалобами на impotentio generandi. Авторами отмечено, что в семенных нитях фертильных мужчин содержание ДНК было всегда постоянным, в то время как у второй категории обследованных содержание ДНК значительно колебалось.
Авторы определяли ДНК лишь в нормальных по форме спермиях и считали, что, по-видимому, морфологические изменения становятся заметными значительно позже, нежели изменения в содержании ДНК. Все же ДНК в спермиях двух обследованных групп мужчин не разнится значительно по количеству в первой группе— от 1,1 до 1,4, во второй—0,3—1,7 условной единицы. У фертильных мужчин в спермиях содержание ДНК было более стабильным. Leuchtenberger и соавторы (1955) сделали вывод, что для использования методики определения ДНК в диагностических целях необходимы дальнейшие исследования.
Nicora и Giarola (1967) приводят 12 наблюдений, в которых при первичном осмотре эякулята мужчин явных патологических отклонений не обнаружено. Однако в дальнейшем при гистохимических исследованиях в отношении степени зрелости семенных нитей и содержания в них ДНК выявлены определенные дегенеративные процессы в головках спермиев.
Ackerman и Sod-Moriah (1968), определяя содержание ДНК в семенных нитях, пришли к заключению, что в среднем ее количество составляет 2,25—Ю-9 мг на клетку или в произвольных единицах 61,9—81,2. Авторы отмечают значительные колебания цифровых величин при исследовании.
Bouters и Nieuwenhuyse (1968) представили данные о зависимости между содержанием ДНК в спермиях и результатами оплодотворения. При исследовании 99 эякулятов, полученных от 33 быков, на основании микрофотометрического определения ДНК установлено, что общее содержание ДНК в эякуляте влияет на оплодотворяющие способности спермы. В то же время отмечено значительное колебание количества ДНК в отдельных спермиях.
Для определения количества ДНК в спермиях можно использовать цитоспектрофотометрическую методику с предварительным окрашиванием мазков спермы по Фельгену. Тонкий мазок эякулята погружают в холодный н. раствор соляной кислоты и гидролизуют в этом растворе в течение 30 минут, а затем на 2 минуты помещают в холодную дистиллированную воду. В течение часа препарат выдерживают в растворе фуксин-сернистой кислоты (в темноте) с последующим проведением через три раствора SO2 по 2 минуты в каждом. После промывания (до 4 часов) в дистиллированной воде, которую следует менять 2—3 раза, мазок высушивают на воздухе и обрабатывают ксилолом.
По методике Фельгена мазок вначале фиксируют над пламенем спиртовой горелки. Мы лишь высушивали препарат на воздухе, так как старались избежать деформации семенных нитей под воздействием высокой температуры. Нами просмотрено 100 эякулятов. Данная окраска не является трудоемкой. Хорошо видна не только форма головки (розового цвета) семенной нити, но и ядра в ней (темно-фиолетовой окраски). Последнее имеет определенное практическое значение, так как выявляется, что у отдельных спермиев ядро не имеет четких границ и выглядит раздробленным. Порой же оно не представлялось однородным, гомогенным из-за различной интенсивности окраски его участков.
Просмотр препарата мы производили при увеличении в 1350 раз (окуляр 15, объектив 90). В морфологически не измененных спермиях мы могли констатировать две формы головок: большие круглые и овально-продолговатые (рис. 11). Об этом же сообщал Shettles (1960). Правда, мы не смогли обнаружить хромосом в головках спермиев, на что указывал автор. В зависимости от строения головки семенной нити соответствующую форму имеет и ядро в ней. В круглых головках оно округлое, в овальных — продолговатое и более интенсивно прокрашиваемое.
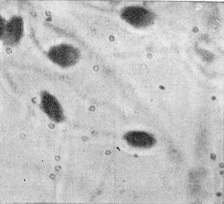
Рис. 11. Формы головки
спермиев. Овальная форма головки — две внизу; круглая форма— две сверху. Окраска по Фельгену. Ув.Х 2000.
Определение морфологии семенных нитей производилось нами в эякулятах с нормо-, олиго-, астено- и тератоспермией. Предварительный диагноз ставился на основании исследования спермы по методике Рубенкова (1959).
| Диагноз | Число наблюдений | % патологических форм в области головки | |
| по Рубенкову | по Фельгену | ||
| Нормоспермия | 30 | От 1,6 до 9,2 | От 2,7 до 9,3 |
| 5,1±1,2 | 6,2±1,9 | ||
| Олигоспермия | 36 | От 13,2 до 45 | От 14 до 50 |
| 24,6±5,2 | 33±9 | ||
| Астеноспермия | 21 | От 3,4 до 9,8 | От 4,6 до 12,3 |
| 6,2±0,9 | 7,4±2,1 | ||
| Тератоспермия | 13 | От 12,3 до 34,3 | От 11 до 35,4 |
| 21±6,3 | 29,4±8,5 | ||
Из табл. 8 видно, что при окраске по Фельгену процент патологических форм в области головки несколько выше, нежели по методике Рубенкова. Однако цифровые различия статистически не достоверны. Некоторое увеличение процента дегенеративных форм произошло за счет констатации патологии в области ядра спермиев. Данные же о морфологии шейки — хвоста по этим двум методикам получены вполне идентичные. У перезрелых спермиев возможность к созданию жизнеспособного зародыша исчезает значительно раньше потери способности к оплодотворению яйцеклетки. Эти изменения в семенных нитях находят выражение в отсутствии гомогенности окраски ядер при использовании методики Фельгена. На основании наблюдений можно прийти к заключению, что для определения патологических форм спермиев с успехом может быть использована окраска семенных нитей по методике Фельгена. Для решения вопроса о нормоспермии желательным является констатация строения ядра спермиев.
Описанное выше определение морфологии спермиев по методике Фельгена было предварительно проведено нами в связи с тем, что для констатации ДНК в головках семенных нитей мы исследовали только нормальные спермин, чтобы можно было сравнивать между собой полученные результаты. Кроме этого, при цитоспектрофотометрическом исследовании применялся один зонд. Для исследования были отобраны 20 эякулятов с нормоспермией, 10 — с астеноспермией и 10 — с олигоспермией, причем, как сказано выше, во всех препаратах определение проводилось лишь у 100 нормальных по форме спермиев.
При прохождении света через слой вещества его интенсивность уменьшается. Это происходит в результате взаимодействия световой волны с электронами вещества, причем часть световой энергии передается электронам. Уменьшение энергии световой волны при прохождении ее через слой вещества, называется поглощением света.
Если обозначить Iо интенсивность падающего светового потока, I — интенсивность прошедшего светового потока, то по закону Ламбердта—Бугера—Бера I = I0l—μcd, где μ — коэффициент поглощения, величина которого зависит от характера поглощения вещества; с — концентрация вещества; d — толщина слоя. В десятичной логарифмической форме этот закон имеет вид lgl = lgl0—μcd, lgl0 —lgl = μcd, величина pcd характеризует уменьшение интенсивности светового потока (поглощение света) и называется оптической плотностью — экстинцией (Σ).
Если измерить величину i фототока при прохождении света через участок поля препарата, не содержащий поглощающего вещества, то мы получим фототок 10. Затем измеряем величину фототока при прохождении света через участок, содержащий окрашенный объект I. В результате получаем lgl0 —lgI = Σ. Величина Σ характеризует поглощение света окрашенным препаратом. Σ = μcd, где μ — константа для каждого вида вещества, d — во всех средах приблизительно одинакова. Следовательно, можно говорить, что величина Σ прямо пропорциональна концентрации хромофора.
При реакции Фельгена в результате кислого гидролиза ДНК образуется комплекс альдегид — краситель. Известно, что реакция протекает линейно, т. е. число молекул образовавшегося окрашенного комплекса пропорционально числу молекул ДНК. В связи с этим можно считать, что величина оптической плотности, измеренная нами, свидетельствует о содержании ДНК в клеточном ядре. На основании различия оптической плотности мы могли отметить значительные колебания количества ДНК в нормальных спермиях во всех препаратах независимо от диагнозов. Проведенное определение не дало основания говорить о зависимости цифровых величин ДНК от качества эякулята.
Произведя же раздельное фотометрирование семенных нитей с круглыми и овальными головками, мы получили и более стабильные результаты. В группе с круглыми формами величина оптической плотности соответствовала 0,53±0,008, с овальными — 0,3±0,006. Статистическая обработка показала достоверность различия этих величин с точностью до 99,9% (р <0,001). Поскольку реакция Фельгена линейна, на основании проведенного исследования можно судить о содержании ДНК. Кроме того, наблюдения позволяют с вероятностью, большей 99,9%, утверждать, что спермии с овальными и круглыми головками различаются по содержанию ДНК в их ядрах. Это подтверждает, что форма головок является не только количественным, но и качественным отличием семенных нитей. По-видимому, это происходит из-за присутствия в одних спермиях Х-, а в других Y-хромосомы.
Произведя раздельный подсчет семенных нитей с различной формой головки, мы не смогли констатировать определенной зависимости присутствия в эякулятах спермиев с овальными или круглыми головками. В различных препаратах их процентное соотношение значительно варьировало (от 18 до 86%). Заманчивым является предположение, что этим можно объяснить рождение в отдельных семьях детей преимущественно одного пола.
Интересные данные в этом плане представлены Schilling и Schmik (1967). Исходя из того, что следует различать «легкие» и «тяжелые» спермии, авторы производили последовательное оплодотворение коров семенными нитями (полученными из осадка эякулята) после различного времени их осаждения. При осеменении «тяжелыми» спермиями получено в основном маточное поголовье, это давало основание предположить, что «тяжелые» семенные нити содержат Х-хромосому. Дальнейшее раздельное определение морфологии головки показало, что у «легких» семенных нитей она на 4,8% короче и на 6,7% уже, чем у «тяжелых». Отмечено также, что спермии с предполагаемой Y-хромосомой более подвижны.
В. Н. Шредер (1965) произвела разделение спермиев методом электрофореза (на анодные и катодные семенные нити). При искусственном осеменении животных этими двумя видами спермиев соответственно получено увеличение самок или самцов в потомстве. Однако интерес представляют дальнейшие исследования В. Н. Шредер, которая применяла иммунизацию самок и самцов раздельно анодными и катодными семенными нитями. В результате у самок вырабатывалась стерильность к определенному виду спермиев, а у самцов в крови обнаруживался специфический сперматоксин. Автором произведена и пассивная иммунизация — сыворотками крови от животных, иммунизированных семенными нитями (раздельно анодными и катодными). В опытах на кроликах получены хорошие результаты: до 81% потомства самцов и 73% самок.
В заключение следует сказать, что еще не выработан общедоступный метод для дифференциального различия семенных нитей в зависимости от наличия в них Х- или Y-хромосомы. С этой целью рядом исследователей проводится осеменение животных различными фракциями спермиев (полученных по весу, электрическому заряду и пр.). На основании проведенных нами цитоспектрофотометрических определений содержания ДНК в головках семенных нитей, подтверждающих достоверность предположений Shettles (I960), мы считаем, что для дифференциального отличия спермиев с Х- и Y-хромосомой достаточно констатировать различие в форме их головок: круглая — Х-хромосома, овальная — Y-хромосома.