В последние годы получены многочисленные данные об ультраструктуре и особенностях различных биохимических процессов в сократительном миокарде и проводящей системе сердца. Установлено, что, помимо активного процесса сокращения миофибрилл, существует активный процесс их расслабления, имеющий важное значение для нормального функционирования сердечной мышцы.
С помощью электронного микроскопа показано, что миокард это не синцитий, а состоит из отдельных клеток, ограниченных сарколеммой, представляющей собой двойную мембрану. Каждая клетка содержит ядро, миофибриллы и органеллы (митохондрии, саркоплазматический ретикулум, пластинчатый комплекс), окруженные сарко- или миоплазмой (рис. 1). Энергия, необходимая для мышечного сокращения, вырабатывается в основном в митохондриях. Именно в них происходят достаточно изученные в настоящее время процессы: цикл Кребса, окислительное фосфорилирование, превращения жирных кислот, активный транспорт некоторых ионов. Миофибриллы представляют собой длинные нити, расположенные вдоль мышечных клеток во всю их длину и прикрепленные к цитоплазматическим поверхностям вставочных дисков, разделяющих клетки. Все миофибриллы разделены на участки — саркомеры, которые являются основными структурными и функциональными единицами сокращения. Каждый саркомер состоит из толстых нитей, в которых содержится миозин, и тонких нитей, включающих актин. Наряду с двумя другими белками — тропонином и тропомиозином — актин и миозин являются основными участниками сокращения миофибрилл. При рентгено-структурном анализе показано, что тропомиозин расположен асимметрично около актиновой нити, причем на одну актиновую нить приходятся две молекулы тропомиозина. Поперечная исчерченность, выявляемая при микроскопии, обусловлена неравномерностью распределения нитей в волокне, что и приводит к неравномерному светопреломлению.
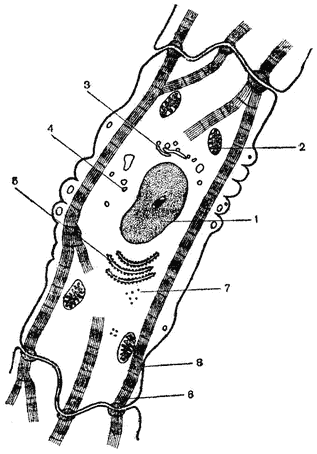
Рис. 1. Структура миокарда при ультрамикроскопическом исследовании (схема).
1 — ядро, 2 — митохондрия, 3 — пластинчатый комплекс, 1 — саркоплазматический ретикулум, 5—зернистый саркоплазматический ретикулум, 6 — миофибрилла, 7 — рибосома, 8 — мембрана клетки.
При сокращении миофибрилл пучки толстых нитей миозина смещаются по отношению к тонким актиновым нитям. При этом изменение размера мышцы происходит вследствие взаимного смещения нитей, а не в результате изменения их размеров. Это движение обусловлено взаимодействием белков актина и миозина за счет энергии, выделяющейся при дефосфорилировании аденозинтрифосфорной кислоты (АТФ) в аденозиндифосфорную кислоту (АДФ). В осуществлении этих процессов большое значение имеет присутствие ионов кальция и магния.
В процессе расслабления миокарда существенную роль играет взаимодействие двух других белков — тропонина и тропомиозина. Комплекс тропонин—тропомиозин угнетает образование связи между актином и миозином, обусловливая возможность активной диастолы сердца. Для последующего сокращения необходима ингибиция этого комплекса, что достигается ритмическим, в пределах каждого сердечного цикла, увеличением содержания кальция в плазме.
Таким образом, в процессах механической активности сердца большое значение имеют перемещения иона-кальция. Катион кальция во время систолы переходит из саркоплазматического ретикулума в миофибриллы, а вовремя диастолы происходят его обратные перемещения.
В последние годы установлено, что количество саркоплазматического ретикулума в миокарде невелико и не всегда может обеспечить удаление кальция из миофибрилл для их полного диастолического расслабления. Доказано, что кальций очень быстро захватывается также митохондриями, которые таким образом тоже участвуют в процессах перемещения иона кальция. По-видимому, более важную роль при этом играет саркоплазматический ретикулум, который обладает способностью не только обеспечивать внутриклеточные перемещения кальция во время систолы и диастолы (подобно митохондриям), но и участвует в его удалении из клетки во внеклеточное пространство.
При перегрузке сердца перемещения кальция становятся более интенсивными и прежде всего за счет активизации саркоплазматического ретикулума. Когда возможности саркоплазматического ретикулума оказываются исчерпанными, тогда увеличивается участие митохондрий в этом процессе. Однако это приводит к нарушению их основной функции образования и использования ими энергии.
В более тяжелых случаях, когда захват кальция указанными органеллами клетки оказывается недостаточным и к началу диастолы его содержание в миофибриллах не уменьшается в необходимой степени, полного расслабления сердечной мышцы не происходит, так как не осуществляется достаточной ингибиции тропонина.
Таким образом, в условиях патологии создается возможность нарушения не только функции сокращения миокарда, но и его активного расслабления с одновременным изменением утилизации энергии.
Выработка энергии в митохондриях может происходить аэробным и анаэробным путем. В обычных условиях первый из них (с использованием кислорода) более экономичен и эффективен. При нем из одной молекулы глюкозы получается 38 молекул АТФ, а при анаэробном — только две ее молекулы.
Химическое превращение веществ, служащих субстратом для образования энергии, в настоящее время хорошо изучено (цикл Кребса, схема распада углеводов Эмбдена — Мейергофа). В условиях патологии в связи с недостаточным притоком кислорода увеличивается роль менее выгодного в целом анаэробного пути обмена со свойственным ему образованием лактата (молочной кислоты) в противоположность пирувату, образующемуся при аэробном обмене.
Накопление лактата приводит к снижению рН, т. е. к ацидозу с накоплением водородных ионов. Последние являются конкурентами кальция в его взаимоотношениях с тропонином и тропомиозином с увеличением активности их комплекса, который, как указывалось выше, препятствует собственно сокращению путем нарушения взаимодействия актина с миозином.
Из АТФ в результате воздействия креатинфосфокиназы (КФК) образуются креатинфосфат и АДФ. Креатин-фосфат поступает к миофибриллам, а АДФ восстанавливается вновь в АТФ. Таким образом, важное значение имеют процессы транспорта энергосодержащих фосфатов к сокращающимся миофибриллам. В условиях патологии недостаток специфического изофермента КФК и ионов магния, несмотря на достаточное количество АТФ в митохондриях, может привести к нарушению сердечного сокращения. Этот фермент весьма лабилен и при повреждениях миокарда может выходить из клеток в плазму, в связи с чем определение его в крови служит одним из важных диагностических тестов при заболеваниях сердечной мышцы.
Можно предполагать, что длительная высокая гиперферментемия, указывающая на потерю миокардом КФК, может служить одним из предвестников снижения сократительной функции сердца.
Процессы сокращения тесно связаны с возбуждением миокарда. Взаимозависимость этих процессор представляется весьма сложной и изучена в настоящее время недостаточно. Формирование импульса возбуждения происходит в синусовом узле, а именно в Р-клетках его, расположенных в основном в центре узла. Они окружены так называемыми переходными клетками, по структуре занимающими промежуточное место между Р-клетками и клетками сократительного миокарда. Р-клетки, кроме синусового узла, содержатся в небольшом количестве в атриовентрикулярном узле. Переходные клетки встречаются также в различных областях предсердий. Пучок Гиса состоит в основном из клеток Пуркинье. Р-клетки отличаются от клеток сократительного миокарда меньшими размерами и малым развитием саркоплазматического ретикулума, миофибрилл и митохондрий. Ядро их, наоборот, несколько больше. Переходные клетки весьма неоднородны, структура их варьирует, приближаясь у одних к Р-клеткам, у других — к клеткам сократительного миокарда. Клетка волокон Пуркинье отличается от клеток сократительного миокарда лишь особенностями строения клеточной мембраны, в которой отсутствует поперечнотрубчатая система.
Для проведения возбуждения по сердцу имеет значение характер межклеточных соединений. Клетки в предсердиях соединены не только конец в конец, но и бок в бок, т. е. более тесно. Это, возможно, объясняет более частую дезорганизацию передачи импульса по предсердиям по сравнению с желудочками. Область межклеточных контактов более чувствительна к различным воздействиям: гипоксии, электролитным сдвигам, изменениям концентрации катехоламинов и кортикостероидов. Импульс возникает в Р-клетках и через переходные клетки и волокна Пуркинье передается сократительному миокарду. При возбуждении миокарда меняются свойства мембраны волокон и происходит перемещение ионов. Вначале натрий быстро переходит из внеклеточного пространства (где концентрация его значительно больше) внутрь клетки, что приводит к изменению электрического потенциала на поверхности клетки. Позже начинается движение ионов калия из клетки во внеклеточное пространство. В период диастолы происходит обратное движение ионов против концентрационного градиента благодаря так называемому калий-натриевому насосу, работающему за счет энергии АТФ. Вхождение в клетку ионов натрия связано с внутриклеточными перемещениями кальция из саркоплазматического ретикулума в миоплазму фибрилл, что обусловливает сокращение миокарда. Увеличение нагрузки на сердце сопровождается увеличением количества входящего иона натрия в клетки с повышением количества высвобождаемого кальция и улучшением сократимости миокарда. При дальнейшем накоплении натрия в клетке происходит столь большой выброс кальция из: саркоплазматического ретикулума в миофибриллы, что транспортирующие системы оказываются недостаточными. В фазе диастолы концентрация кальция остается в саркоплазме повышенной. Это приводит к неполноценности диастолы и уменьшению образования АТФ. Недостаток АТФ усугубляет дальнейшее снижение сократительной функции миокарда и ухудшает работу катионных насосов.
Для осуществления нормальных процессов возбуждения и сокращения в миокарде необходимо присутствие ионов калия, который является основным внутриклеточным катионом. Большое значение имеет соотношение концентраций калия и натрия внутри и вне клетки в различные фазы деятельности сердца. При многих патологических состояниях миокарда содержание калия в клетках миокарда снижается, что сопровождается изменением его деятельности. Избыток калия, наблюдаемый в клинике реже, например при хронической уремии, также приводит к нарушению функции миокарда.
В последние годы благоприятное действие сердечных гликозидов связано с их влиянием на описанные выше процессы, в частности с торможением натрий-калиевого насоса, стимуляцией системы обмена натрий — кальций и повышением притока иона кальция к миофибриллам с положительным инотропным эффектом.
Разнообразные заболевания сопровождаются интенсификацией деятельности функционирующих структур с развитием гипертрофии мышцы сердца.
Интенсивные метаболические процессы в миокарде требуют систематического не только энергетического, но и пластического обеспечения благодаря деятельности генетического аппарата, находящегося в ядре клетки. Прежде всего требуется синтез высокоспециализированных белков, входящих в состав миофибрилл, митохондрий, саркоплазмы и т. д. Для характеристики активности этих процессов можно указать, что время полужизни цитохромов в митохондриях составляет 5 дней, миозина — 8 дней. Синтез белковых компонентов клетки зависит от наличия аминокислот, достаточной активности системы ДНК—РНК и активности ряда ферментов, регулирующих образование пептидных связей. Пластическая функция зависит от интенсивности функционирования миокарда, активности генетического аппарата, влияния нервных и различных гуморальных факторов, например соматотропного гормона и т. д.
Механизм активации генетического аппарата при развитии гипертрофии миокарда в настоящее время неизвестен. Предполагают, что стимуляция этого процесса может быть дефицитом богатых энергией фосфорных соединений в связи с увеличением их расхода на функцию миокарда. Известно, что некоторые средства, обладающие цитостатическим свойством, вызывают торможение пластических процессов, что может ухудшить и функцию сердца. Белковый синтез тормозит кастрация. Способствуют белковому синтезу и снижают в то же время распад белков инсулин, жирные кислоты.
С помощью различных методов исследования в эксперименте была показана активизация синтеза нуклеиновых кислот и белка в миокарде под влиянием оротовой и фолиевой кислот, витамина В12, анаболических гормонов. Эти данные важны ввиду того, что в клинической практике часто необходимо повысить синтез белков в миокарде, стимулировать его функцию. Однако клинические аспекты этой проблемы, выбор показания, дозировка этих средств изучены еще недостаточно в значительной мере из-за трудностей методического характера.
В регуляции процессов, происходящих в сердце, важную роль играют нейроэндокринные влияния и в первую очередь адренергическое действие. Известно, что катехоламины усиливают сократительную функцию сердечной мышцы путем увеличения содержания циклической АМФ и активизации процессов фосфорилирования. По данным отечественных авторов (Б. Н. Манухин, 1966; Ф. 3. Меерсон, 1975, и др.), при ряде заболеваний сердца, протекающих с его гипертрофией, содержание катехоламинов в миокарде уменьшается. Это, возможно, играет роль в последующем снижении сократительной функции миокарда, особенно при необходимости адаптации сердца к периодически повышенной нагрузке, что осуществляется в значительной степени благодаря симпатомиметическим влияниям.
В реализации этих влияний на сердце большое значение имеет состояние β-адренорецепторов сердца. В настоящее время блокаторы β-адренорецепторов широко применяются для лечения коронарной недостаточности и аритмий. Противопоказанием к их назначению считается нарушение сократительной функции с сердечной недостаточностью. Однако в настоящее время установлено, что введение этих препаратов необязательно нарушает метаболизм сердечной мышцы. По-видимому, это обусловлено тем, что в гормональном контроле метаболических процессов в миокарде большую роль играют глюкагон и инсулин.
Различные аспекты изучения метаболизма миокарда, а также происхождение его патологии изложены в материалах советско-американского симпозиума, изданного под редакцией Е. И. Чазова и Ю. Браунвальда (1975), и в монографии Bajusz и Rona (1973).